 动物百科
一、物种概述
旅鼠是啮齿目仓鼠科田鼠亚科中若干类小型啮齿动物的统称,英文名称 lemming 源自挪威语,中文名则来自它们成群迁移的习性。它们不是单一物种,而是一个形态与生活方式高度相似的类群,包含真旅鼠、项圈旅鼠、林旅鼠和沼泽旅鼠等几个属,全世界合计约二十个物种。
旅鼠的体形矮胖,四肢短小,尾巴极短,吻部钝圆,耳朵很小,几乎完全隐没在长而柔软的毛中。成体头体长一般在八至十五厘米之间,尾长一至二厘米,体重多在三十至一百三十克之间,与一只普通仓鼠相近,因此常被形容为“一只被压扁的小球”。
旅鼠
所有旅鼠都分布在北半球的环北极地区——斯堪的纳维亚半岛、俄罗斯北部与西伯利亚、阿拉斯加、加拿大北极地区以及格陵兰。它们是北极苔原生态系统中数量最多、分布最广的食草哺乳动物,也是雪鸮、北极狐、白鼬等捕食者的主要食物。
旅鼠之所以广为人知,并非因为体形或外貌,而是两件事:一是它们每隔三到四年出现一次剧烈的数量爆发与崩落,是种群生态学中被研究得最透彻的周期波动之一;二是流传了近百年、后来被证实完全失实的“集体跳海自杀”传说。前者让旅鼠成为科学样本,后者让它成为大众文化符号。
二、分类与主要类群
在分类学上,旅鼠归入啮齿目、仓鼠科、田鼠亚科。不同学者的处理略有差异:狭义上,旅鼠族(Lemmini)包括真旅鼠属、林旅鼠属和沼泽旅鼠属;项圈旅鼠属则被单独列为项圈旅鼠族(Dicrostonychini)。由于这几个属在体形、食性与栖息环境上高度相似,中文科普和日常表述通常把它们统称为旅鼠。
(一)真旅鼠属
真旅鼠属(Lemmus)是旅鼠的典型代表,包含挪威旅鼠、西伯利亚旅鼠、北美棕旅鼠、白令旅鼠、弗兰格尔岛旅鼠和阿穆尔旅鼠等六个物种。这一属分布最广,从斯堪的纳维亚半岛一直延伸到西伯利亚和北美北部。
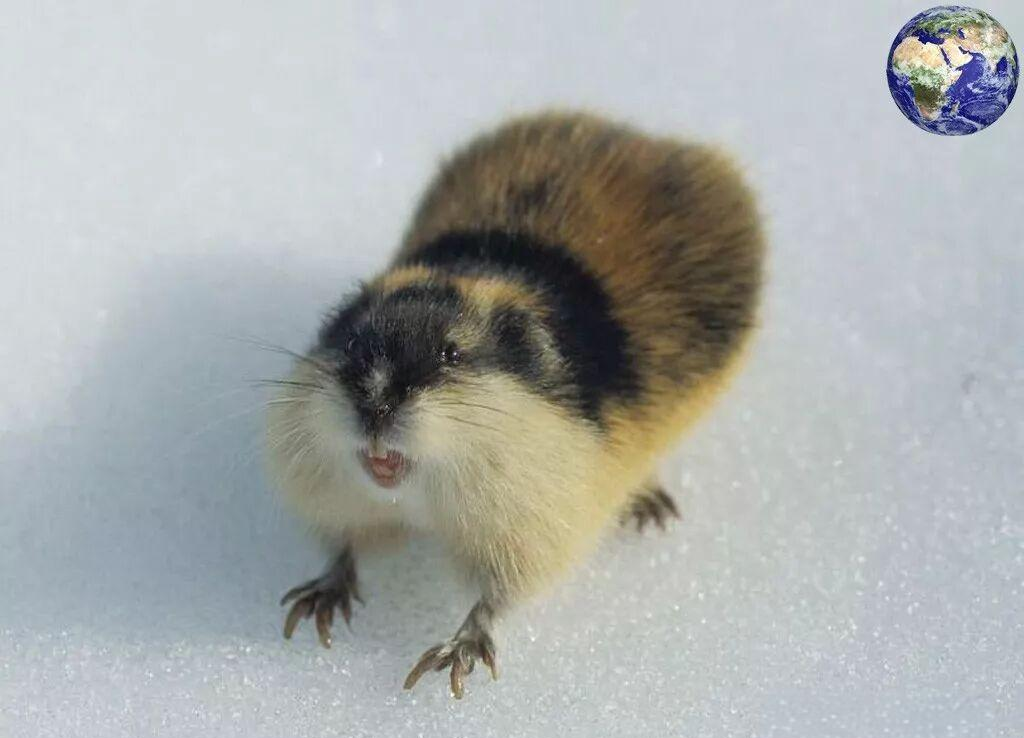
其中挪威旅鼠(Lemmus lemmus)最为著名,也是“旅鼠”形象的原型。它的毛色相当醒目:背部与头部为黑褐色,间杂橙黄褐色的长毛,体侧偏浅,形成明显的色带(见图1)。这种鲜艳的配色在苔原的枯草与积雪背景中十分显眼,与人们印象中灰扑扑的“老鼠”很不一样。
真旅鼠属以苔藓为主要食物,同时取食禾草、莎草与矮灌木的芽叶。它们对栖息地的要求不严,苔藓苔原、莎草沼泽、山坡草甸都能见到,但密度最高的地方通常是食物丰富、雪层较厚的低地苔原。
(二)项圈旅鼠属
项圈旅鼠属(Dicrostonyx)是分布最靠北的一类旅鼠,栖息在格陵兰、加拿大北极群岛与欧亚大陆北部的高纬苔原,有北极旅鼠、北方项圈旅鼠等七个物种。它们在形态上有两个其他旅鼠不具备的特征。
第一,它们是啮齿动物中唯一冬季全身换成纯白毛的种类。这套白色冬毛与雪地完全融为一体,是极地环境中最彻底的季节伪装;北极旅鼠颈侧还有一条浅色“项圈”,属名即由此而来。
第二,入冬前,它们前肢第三、第四趾的爪甲会异常增长,形成分叉的双爪,用来刨开坚硬的积雪与冰壳,在雪下开辟通道。这种随季节变化的“雪爪”在哺乳动物中十分罕见。与真旅鼠相比,项圈旅鼠的迁移性较弱,冬季常成群聚集在雪下活动。
(三)林旅鼠属
林旅鼠属(Myopus)只有林地旅鼠一个物种,分布范围从北欧一直延伸到西伯利亚的针叶林带。与苔原上的近亲相比,它体形更小、习性更隐蔽,多在林下苔藓层中活动,以苔藓为主要食物,很少进入开阔苔原。
林地旅鼠在遗传学上颇为特殊:部分种群中携带变异 X 染色体的雌性比例明显偏高,胚胎期的性别比严重偏向雌性,是哺乳动物性别决定机制研究中经常被引用的特例。
(四)沼泽旅鼠属
沼泽旅鼠属(Synaptomys)包含北方沼泽旅鼠和南方沼泽旅鼠两个物种,分布在北美北部的沼泽、湿地与湿润草甸。它们体形小、毛色深,善于在水边泥炭层中挖掘通道,数量波动远不如真旅鼠剧烈,公众认知度也低得多。由于食性与栖息地特殊,部分学者倾向于把它们单独处理。
为便于对照,表1汇总了上述四个类群的主要差异。
表1 旅鼠主要类群对照
| 类群 | 代表物种 | 主要分布 | 形态与习性特征 |
| 真旅鼠属 | 挪威旅鼠、西伯利亚旅鼠、北美棕旅鼠 | 斯堪的纳维亚、西伯利亚、北美北部 | 毛色橙褐与黑褐相间;以苔藓为主食;迁移性强;数量周期明显 |
| 项圈旅鼠属 | 北极旅鼠、北方项圈旅鼠 | 格陵兰、加拿大北极、欧亚北部高纬苔原 | 冬季全身纯白;前爪冬季长出分叉双爪;迁移性弱 |
| 林旅鼠属 | 林地旅鼠 | 北欧至西伯利亚针叶林带 | 体形最小;栖于林下苔藓层;雌性比例偏高 |
| 沼泽旅鼠属 | 北方沼泽旅鼠、南方沼泽旅鼠 | 北美北部沼泽与湿地 | 毛色深;善在泥炭层掘道;数量波动较平缓 |
三、形态特征
旅鼠的身体结构处处体现着对寒冷与低矮植被的适应。躯干圆筒形,四肢短,尾极短,整体轮廓接近椭圆,这种体形相对表面积小,有利于减少热量散失。头骨粗壮,吻部短而钝,眼睛小,耳朵几乎完全藏在毛中——在零下二三十摄氏度的环境里,裸露的耳廓是巨大的散热口,缩小它是极地小型哺乳动物的通用策略。
被毛浓密而柔软,长毛之下还有一层厚绒毛。真旅鼠类多为棕褐、橙褐与黑褐的混合色,项圈旅鼠则呈现明显的季节换装:夏季灰褐带锈色,背部有黑色纵纹;冬季整体转为纯白。换毛受光周期调控,在极地短暂的秋季完成。
牙齿是理解旅鼠食性的关键。作为啮齿动物,它们的门齿终生生长,必须靠不断啃咬硬物磨短;颊齿的齿冠结构复杂耐磨,适合研磨富含硅质的禾草与苔藓。与近缘的田鼠相比,旅鼠对禾草、莎草的消化效率更低,这解释了它们为何需要进食大量食物,并倾向于选择含氮量较高、次生代谢物较少的植物部位。
旅鼠的寿命很短。野外个体大多只能活一到两年,绝大多数在第一个冬天或第一个繁殖季之后被天敌捕食;人工饲养条件下可活到三年左右。
图1 雪地中的挪威旅鼠
四、分布与栖息环境
旅鼠的分布几乎覆盖整个环北极苔原带:从挪威、瑞典、芬兰的北部山地,向东经俄罗斯北极海岸与西伯利亚,跨过白令海峡进入阿拉斯加,再向东到加拿大北极群岛,直到格陵兰岛。它们不进行长距离季节性迁徙,也不进入真正的极地冰盖,分布北界大致与有积雪覆盖的苔原北缘重合。
栖息地类型随物种而异。真旅鼠偏好湿润的苔藓苔原、莎草沼泽与河岸草甸,这些地方苔藓与禾草产量高、冬季积雪厚;项圈旅鼠更适应干燥的石质苔原与山地荒原,并有意避开地衣苔原,因为地衣营养价值低且含有抑制消化的成分;林旅鼠生活在针叶林下的苔藓层;沼泽旅鼠则几乎不离湿地。
微生境的选择主要由两个条件决定:食物与雪。厚而稳定的雪层在极地冬季相当于一床棉被,雪下温度可维持在接近零度,使旅鼠能够在整个冬天持续取食与繁殖。因此,雪深不足或频繁出现冻融的地区,旅鼠密度通常较低。
在季节变化上,许多种群会在春季向地势较高、排水良好的坡地或林缘移动,秋季再返回开阔苔原。这种短距离的季节迁移与后来被夸大成“集体自杀”的大规模扩散并不是一回事,前者是常规的栖息地利用,后者只在种群密度极端过高的年份出现。
五、生活习性
(一)食性与取食
旅鼠是典型的植食者。真旅鼠以苔藓为主食,这在啮齿动物中并不常见——苔藓热量低、含大量难消化的纤维,需要靠大量进食与发达的盲肠发酵来补偿。除苔藓外,它们取食禾草、莎草、矮桦与极地柳的芽、叶、细枝,也吃浆果、种子、根茎与地衣。项圈旅鼠更偏重柳与桦的嫩枝叶,并会在夏季于洞中储藏越冬饲料。
旅鼠的食量与其体形完全不成比例。北极地区的观察显示,一只旅鼠一顿可以吃下接近自身体重的食物,一年累计消耗的植物可达四十五公斤,因此当地常把它们戏称为“肥胖忙碌的收割机”。这种高强度的取食既是生存必需,也是它们改变苔原植被结构的主要原因。
旅鼠还有食粪行为:取食自身柔软的粪便,以回收盲肠微生物合成的维生素与蛋白质。这在以低氮苔藓为主食的动物中十分普遍,相当于把已经发酵过的食物再“过一遍”,提高养分利用率。
(二)雪下生活
旅鼠不冬眠。整个冬天,它们生活在积雪与地面之间的空腔层中,这一层被生态学称为“雪下空间”。旅鼠在其中挖掘纵横的隧道,连通取食点、休息室与育婴巢;巢材多为干草、羽毛,有时混入麝牛的绒毛。雪层隔绝寒风,使雪下温度稳定,旅鼠可以在严冬继续活动、生长,甚至在雪下繁殖。
雪下生活也带来风险。若冬季出现降雨后骤冻,地表会形成一层坚硬冰壳,旅鼠无法掘穿,取食通道被切断,大量个体饿死;这类“雨雪事件”随气候变暖而增多,被认为是北欧旅鼠数量周期减弱的可能原因之一。
(三)独居、领域与扩散
在正常密度下,旅鼠基本独居,繁殖期的成对个体占据一个洞穴并共同护巢,对同种入侵者表现出明显的攻击性。当种群密度升高,领域边界逐渐瓦解,个体被迫向外扩散。
扩散时的旅鼠会成百上千地穿越苔原,遇到河流、湖泊便直接下水游渡。旅鼠确实善于游泳,也会在水面漂浮休息,但长距离渡水消耗极大,体弱者会在途中溺亡。这类死亡是个体在极端条件下的损耗,而不是群体性的“主动赴死”,其性质与传说中的集体跳海完全不同。
(四)昼夜节律
旅鼠的活动节律随光照变化。极昼期间,它们几乎全天活动,没有明显的昼夜之分;进入七月以后逐渐转向夜间活动,白天多留在洞穴与隧道中。由于不储存脂肪越冬,它们没有真正的休眠期,必须依靠持续取食维持代谢,这也使它成为苔原上几乎全年可见的活动踪迹。
六、繁殖与种群周期
(一)极强的繁殖能力
旅鼠的繁殖参数在小型哺乳动物中属于极端水平:妊娠期仅二十天左右;每窝产仔数变动很大,少则一两只,多则十几只,常见为三至七只;在食物充足的年份,一只雌鼠一年可以产六至七窝。幼鼠发育极快,断奶只要两到三周,雌性在三到五周龄即可受孕,最短的两次生育间隔记录为十七天。
这种“快生、多生、早生”的组合,理论上足以让种群在几个月内数量暴增。若从春季的一对旅鼠起算,按每窝五只、每月一窝的保守估计,到秋季其后代也可达到数百只。加上旅鼠能在雪下越冬繁殖,种群在丰年往往呈指数式上升。
表2汇总了主要繁殖参数,数据来自对挪威旅鼠与项圈旅鼠的野外与实验室研究。
表2 旅鼠主要繁殖参数
| 项目 | 典型数据 | 说明 |
| 妊娠期 | 约 19—21 天 | 真旅鼠属为 16—23 天,随食物与气温略有波动 |
| 每窝产仔数 | 常见 3—7 只,最多 16 只 | 挪威旅鼠约六成雌性产 3—5 只;项圈旅鼠最多 11 只 |
| 年产窝数 | 2—3 窝,丰年可达 6—7 窝 | 条件适宜时可全年繁殖,包括雪下越冬繁殖 |
| 性成熟年龄 | 雌性 3—5 周,雄性 5—6 周 | 实验室条件下最快两周即可受孕 |
| 最短生育间隔 | 约 17 天 | 产后即可再次发情 |
| 寿命 | 野外 1—2 年,饲养可达 3 年 | 多数个体死于第一个冬季或繁殖季后的捕食压力 |
(二)三至四年一次的数量周期
旅鼠最引人注目的生态特征是数量的大幅周期波动。在北欧与北美北部的长期监测中,旅鼠种群大约每隔三到四年出现一次高峰:高峰年密度可比低谷年高出两到三个数量级,局部地区每公顷可达数百只;随后在一年内急剧崩落,几乎从视野中消失,再经过数年缓慢回升。
这种波动并不是均匀的锯齿曲线。高峰期的持续时间通常很短,崩落往往突然而彻底;不同地区的高峰也并不完全同步,但存在明显的区域性同步现象。表3概括了周期各阶段的典型表现。
表3 旅鼠种群周期的典型阶段
| 阶段 | 主要表现 | 大致持续时间 |
| 回升期 | 密度缓慢上升,天敌数量仍低,繁殖成功率较高 | 2—3 年 |
| 高峰期 | 密度极高,领域瓦解,个体外迁,植被被大量啃食 | 数月至一年 |
| 崩落期 | 食物枯竭、疾病扩散、天敌聚集,数量骤降 | 数月至一年 |
| 低谷期 | 局部几乎绝迹,天敌随之减少或迁出 | 1—2 年 |
(三)周期成因的争论
为什么旅鼠会周期性暴增又骤然消失,是种群生态学持续了近百年的问题,至今没有单一解释能完全说明。历史上先后出现过几种主要假说。
早期观点认为,高峰之后食物被吃光,旅鼠因饥饿而死亡,数量随之回落。这一解释直观,却无法说明为何崩落常发生在食物尚未完全耗尽之时。随后,天敌假说受到重视:雪鸮、北极狐等捕食者的数量会滞后地跟随旅鼠上升,在高峰末期形成巨大的捕食压力;疾病与寄生虫的传播在高密度条件下也显著加快。
二十世纪后期,植物防御假说提供了新的机制:过度啃食会诱导苔藓与禾草产生更多次生代谢物,降低其可食性,使旅鼠即使不挨饿也难以获得足够能量,繁殖随之受抑。近年来的综合研究则倾向于把上述因素放进同一个非线性框架:食物质量、捕食者的功能性反应、冬季雪况与气候波动共同作用,使种群动态呈现明显的非线性,甚至带有混沌特征,因而不同地区的周期长度与振幅并不一致。
气候因素的重要性在近二十年明显上升。冬季变暖带来的雨雪事件、冻融交替与雪层结构改变,会直接破坏旅鼠的雪下取食环境;北欧部分地区的长期数据显示,旅鼠周期的振幅正在减弱,高峰不再像过去那样显著。这一变化被视为北极生态对气候变暖的早期响应之一。
七、天敌与生态作用
旅鼠是北极苔原食物网的中枢。以它们为主要猎物的动物包括雪鸮、白鼬、北极狐、贼鸥、狼、狼獾以及部分隼类。捕食强度相当惊人:据北极地区的观察记录,一对雪鸮连同雏鸟一天可捕食约一百只旅鼠。
旅鼠的数量直接决定捕食者的繁殖成败。旅鼠丰年,北极狐几乎每个洞穴都有居住,每窝可产八只幼崽;旅鼠稀少的年份,雌狐因食物不足而体质下降,甚至不怀孕,即便产仔也大量夭折。雪鸮的表现同样明显:旅鼠多时集中繁殖,旅鼠少时大批南迁,形成北美每隔三到四年一次的雪鸮南侵现象。
反过来,捕食压力又作用于旅鼠种群,构成典型的功能性反应。这种双向耦合使旅鼠成为研究“营养级联”的理想对象:一个猎物物种的波动,会沿着食物链传导到捕食者的数量、分布乃至整个苔原群落的结构。
旅鼠对植被与土壤也有直接影响。高强度啃食会改变苔藓与禾草的比例,抑制灌木扩张;它们的排泄物与尸体把植物固定的养分快速返还土壤,加速养分循环。在苔原这样生产力极低的环境中,这种“扰动—更新”的作用不可忽视。
此外,旅鼠还是多种病原体的自然宿主。研究记录显示,它们可携带土拉伦菌病、钩端螺旋体病与棘球绦虫等病原,与当地公共卫生存在间接联系。野外接触旅鼠或其洞穴时应注意防护,避免直接抓取。
八、与人类的关系
(一)“集体自杀”传说的由来与澄清
流传最广的说法是:旅鼠数量过多时,会成群结队奔向大海,从悬崖上集体跳下自尽,以“牺牲自己”换取种群延续。这个故事在二十世纪的科普读物、教科书与商业广告中反复出现,几乎成了旅鼠的代名词。
传说的现代版本主要来自一九五八年的迪士尼自然纪录片《白色荒野》。影片中有一段旅鼠成群跃入海中溺亡的画面,配以“它们正在完成种群自我调节”的旁白,视觉冲击极强。后来的调查披露,这段画面是在加拿大阿尔伯塔省的内陆地区摆拍的:摄制组向当地儿童收购旅鼠,把它们放在旋转的转盘上甩出,再剪辑成“集体投海”的连续镜头——拍摄地点附近根本没有海。这一事件后来成为自然纪录片伦理讨论中的经典反面案例。
事实层面的情况要朴素得多。旅鼠在密度过高时会向外扩散,寻找新的栖息地与食物,途中需要穿越河流与湖泊;它们会游泳,但体力有限,遇到水面过宽、水流湍急或气温过低时,部分个体会力竭溺亡。所谓“集体自杀”,是把扩散过程中个别死亡放大、剪辑并赋予意图之后得到的叙事,自然界中并不存在主动寻死的旅鼠种群。
需要说明的是,这一传说并非迪士尼首创,十九世纪的北欧民间已有类似说法,只是影像让它获得了全球传播力。今天主流百科与教科书均已明确否定“集体自杀”的表述。
(二)“旅鼠效应”的比喻
传说虽假,却派生出仍在使用的术语。“旅鼠效应”在金融与社会科学中指投资者或群体成员不加独立判断、盲目跟随他人行动的从众行为,常用来描述资产价格泡沫中的追涨与恐慌性抛售。这个比喻的前提本身是错误的,但它所指涉的现象——群体非理性——确实存在,因此术语得以保留,只是使用时不宜再复述“旅鼠真的会自杀”。
(三)保护现状与研究价值
从保护角度看,旅鼠的处境并不紧张。多数物种分布广、数量大,在世界自然保护联盟的评估中被列为无危。真正的风险来自栖息地变化:苔原升温、灌木扩张、冻融格局改变、道路与采矿开发,都在压缩适宜的雪下生存空间;周期振幅的减弱说明种群对气候扰动的敏感度正在上升。
在科学研究上,旅鼠的价值远超其体形。它们是检验种群周期理论、捕食者—猎物耦合、植物防御假说与气候变化影响的经典模型物种,北欧与北美多地的长期监测序列已经延续数十年,是理解北极生态系统如何运转的重要窗口。
对普通观察者而言,最基本的准则是不投喂、不捕捉、不惊扰。旅鼠是整个苔原食物链的基础,一次看似无害的抓捕,可能影响一巢雪鸮或一窝北极狐的存活;同时,接触野生动物也存在病原暴露风险。远距离观察它们雪下的跑道与取食痕迹,已经足以感受这种小型啮齿动物在极地生态中的分量。
九、结语
旅鼠是一种被传说遮蔽了很久的动物。它体形小、寿命短、繁殖快,靠极端的生育能力与雪下生存技巧在严酷的北极立足;它每隔三到四年剧烈涨落,牵动着从雪鸮到北极狐的整个捕食者群落;它被误传为“集体自杀”的主角,实际上只是在种群过密时向外扩散,在渡水途中偶有溺亡。
把传说与事实分开之后,旅鼠的形象反而更有意思:它不是某种悲壮的自我牺牲者,而是一个把“快速繁殖、快速扩散、快速死亡”做到极致的物种,是苔原食物网中最不起眼也最关键的一环。理解它,也就理解了北极生态系统如何在极低的能量输入下维持运转。